Установление и поддержание клеточной идентичности
На эмбриональной стадии и в ранний период развития клетки устанавливают свою идентичность, которая сохраняется на протяжении всей жизни — пока не теряется в процессе старения. Хотя ДНК каждой клетки организма одинакова (или почти одинакова), эпигенетическая структура — включая метилирование, гистоны, нуклеосомы и хроматин — является трёхмерной и различается в зависимости от типа клетки. Это происходит в "центре управления" клетки, её ядре. Эпигенетическая структура является основой клеточной идентичности.
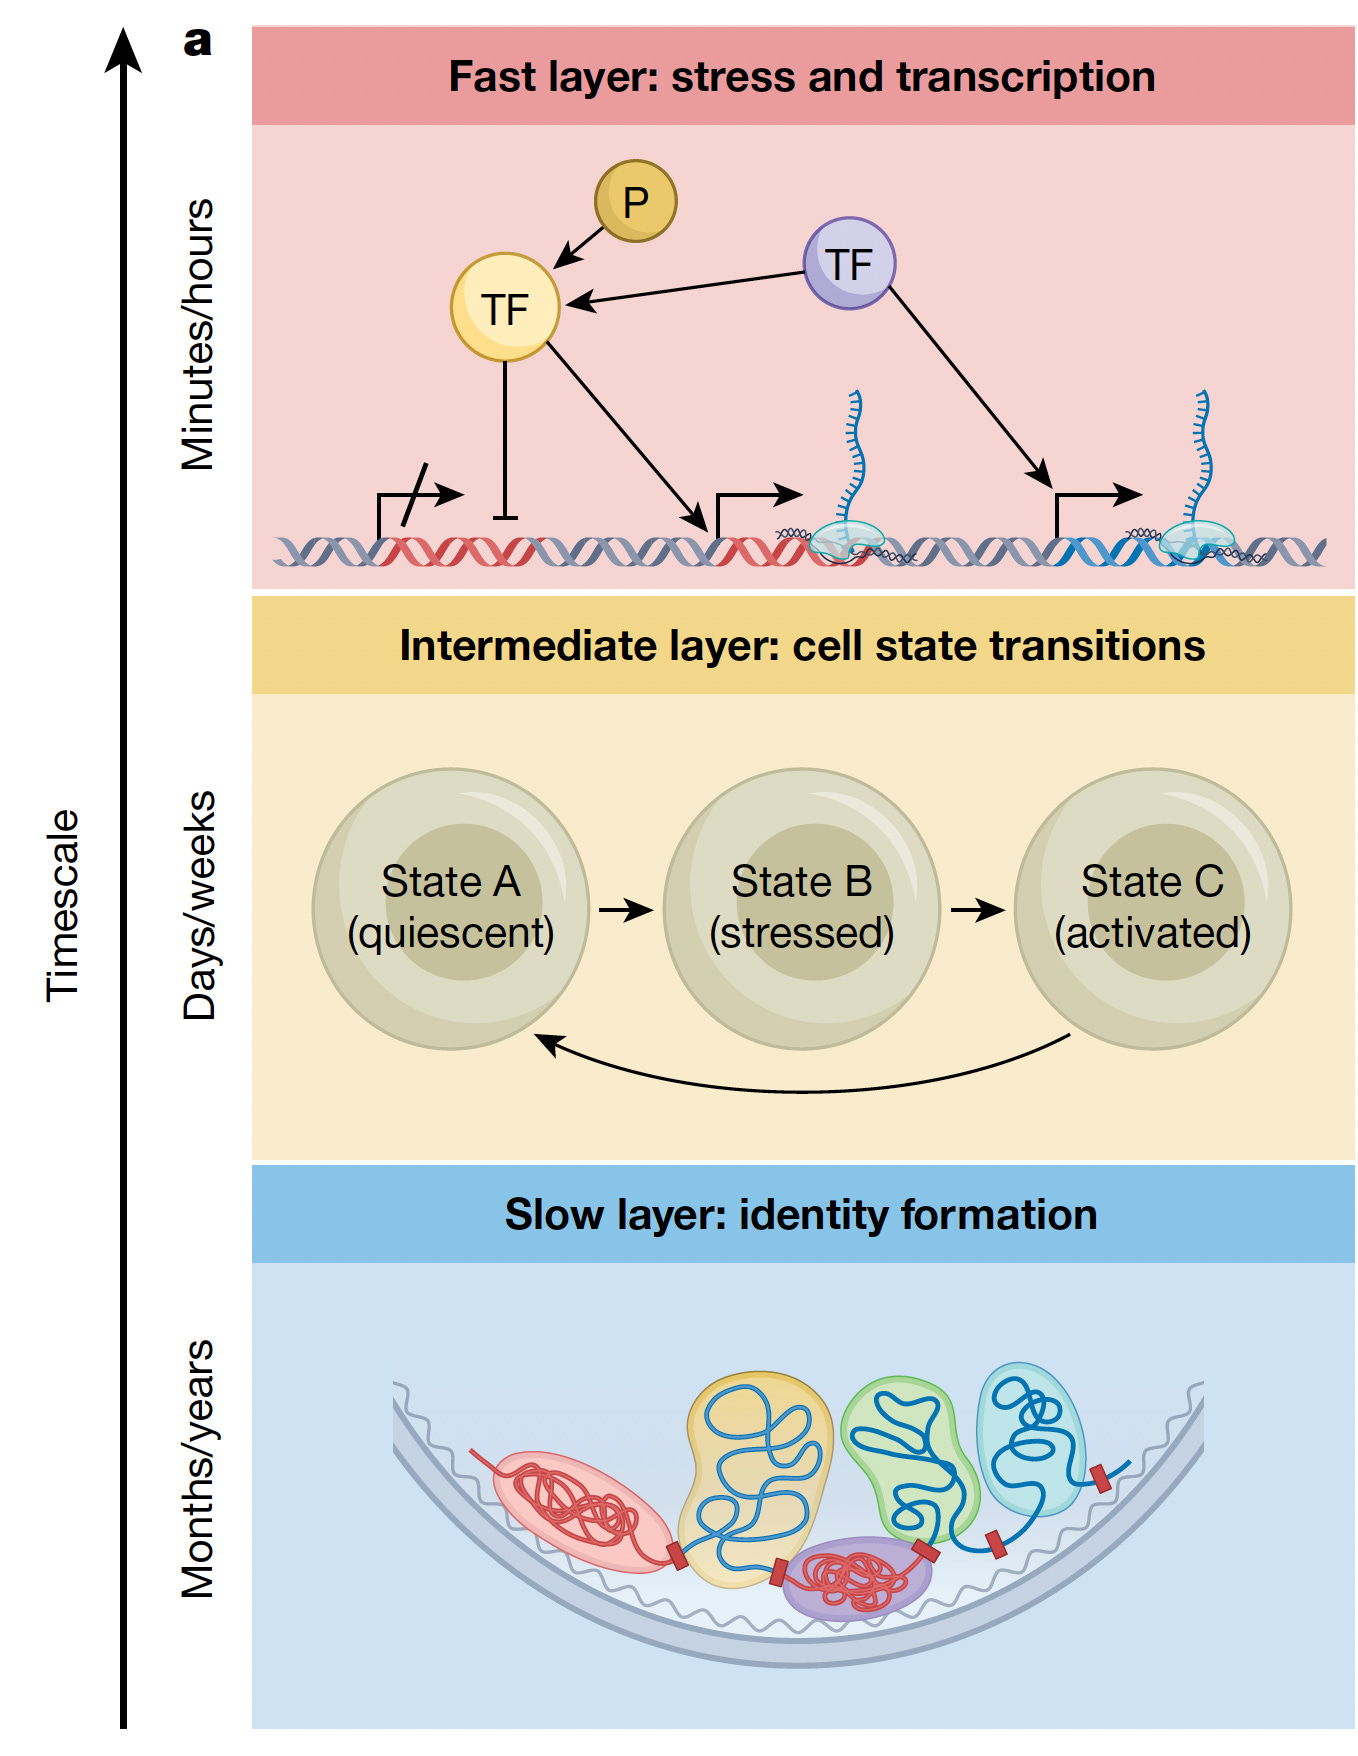
Существует трёхуровневая регуляторная "грамматика", поддерживающая идентичность клетки. Быстрый слой реагирует на острый стресс в течение минут или часов, опираясь на выработку факторов транскрипции, таких как AP-1. Промежуточный слой реагирует в течение дней или недель, проходя через переходные состояния клеток, такие как активация клетки для содействия заживлению и возврату в базовое состояние. Ключевую роль играет медленный слой — тот, который блокирует и изолирует идентичность клетки, образуя твёрдую границу, и опирается на архитектуру хроматина.
Потеря идентичности и мезенхимальный дрейф
Это приводит нас к модели эпигенетического ландшафта Уоддингтона, описывающей, как клетки дифференцируются или де-дифференцируются — модели, которая хорошо выдержала испытание временем с момента создания Конрадом Уоддингтоном в 1957 году. Клетка, находящаяся в долине, представляет собой отличительную специализированную клетку. Крутой склон указывает на робастность, также называемую канализацией, при которой глубокий бассейн поддерживает идентичность клетки и способствует её стабильности. Дифференцированная клетка "держится в своей полосе" в модели ландшафта и ограничена от выскальзывания, смены идентичности. Но при старении долины теряют свой склон, бассейн становится мелким, происходит потеря эпигенетических ограничений и наблюдается нестабильность идентичности клетки. Это создаёт условия для мезенхимального дрейфа — дрейфа клеточной идентичности.
На протяжении жизни, после пика зрелости, когда специализированные клетки (мозга, печени, сердца, почек и т. д.) полностью и необратимо дифференцированы и находятся на пике функциональности, долины теряют склон, а бассейны постепенно становятся мельче — процесс, известный как деканализация. Проблема в том, что нет эволюционного давления для сохранения борозд, долин и бассейнов в молодёжном состоянии, поскольку "тень отбора" распространяется на пострепродуктивную траекторию.
Полихребцовый репрессивный комплекс 2 (PRC2) можно рассматривать как скульптор этого эпигенетического ландшафта — молекулярный механизм, формирующий борозды, долины и бассейны. Он устанавливает твёрдую границу, глубокие эпигенетические ограничения для идентичности клетки.
Эпигенетические часы поразительно информативны для 348 видов млекопитающих, включая людей, для предсказания максимальной продолжительности жизни и истории жизни, но до сих пор было неясно, что они на самом деле измеряют. Оказывается, они измеряют PRC2 — темп эрозии медленного слоя! (Если быть точным, то низкометилированные области PRC2).
PRC2 вступает в действие при хроническом воспалении, которое подавляет способность быстрого слоя реагировать и блокирует PRC2, что приводит к эрозии ландшафта Уоддингтона и способствует потере идентичности клетки. Даже после разрешения хронического воспаления эпигенетические изменения в хроматине могут сохраняться. Эта потеря эпигенетической грамматики также может быть основой для превращения клетки в раковую. Окончательная эрозия медленного слоя по сути предвещает архитектурный коллапс ландшафта Уоддингтона.
Мезенхимальное состояние, как схематично показано ниже на примере эпителиальной клетки, репрезентативной для всех дифференцированных, специализированных клеток:
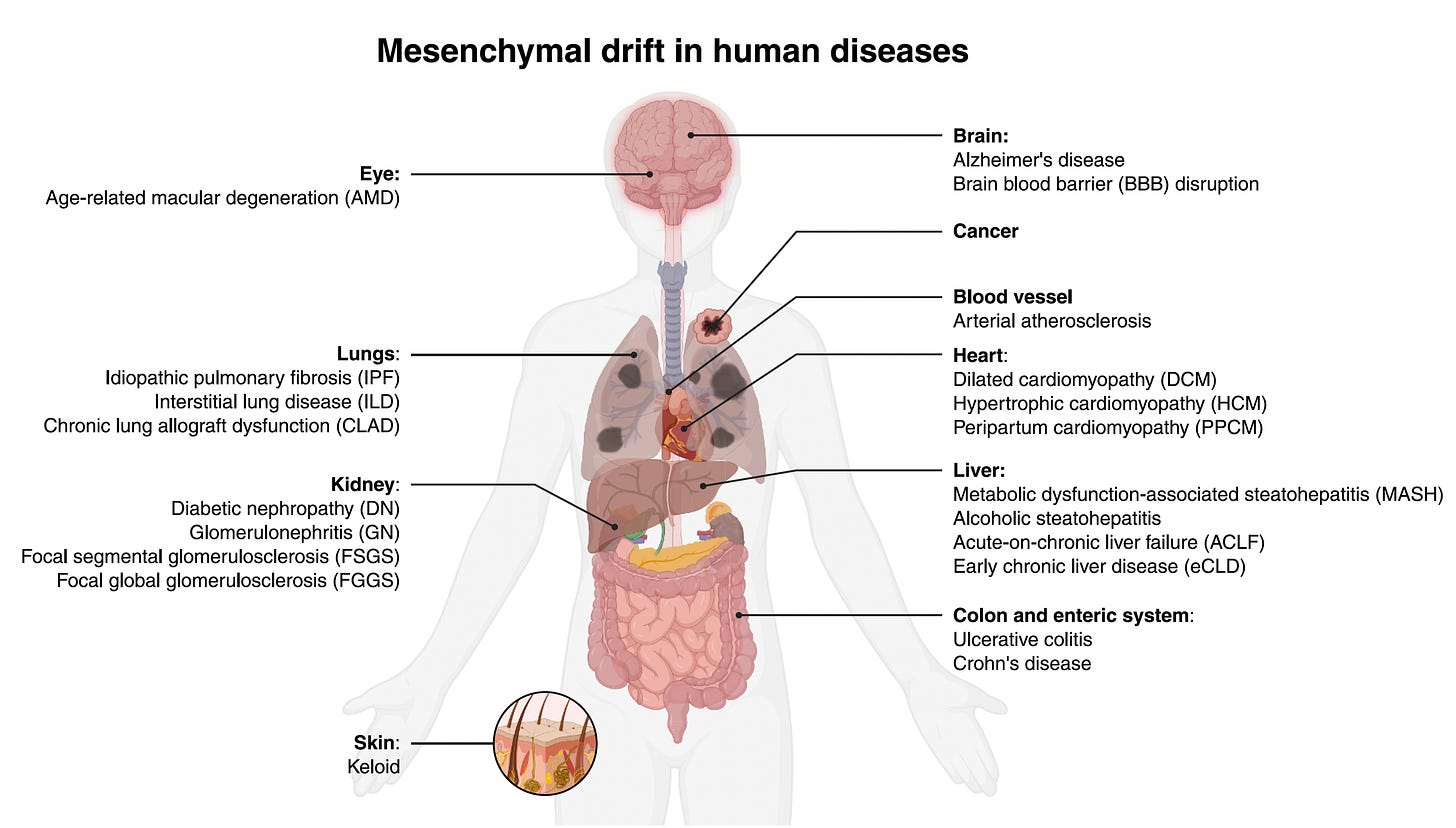
Эта трансформация обозначает переход клеток в мезенхимальное состояние, сходное с фибробластами, порождающее фиброзные рубцы и отложение внеклеточного матрикса, подобного вязкой замазке. Это подтверждено в 46 типах тканей и является неотъемлемой частью прогрессирования заболеваний и неблагоприятных исходов. При поиске связи между мезенхимальным дрейфом и возрастными заболеваниями обнаруживаются ассоциации от атеросклероза до возрастной макулярной дегенерации и болезни Альцгеймера.
Вмешательства для сохранения или восстановления идентичности
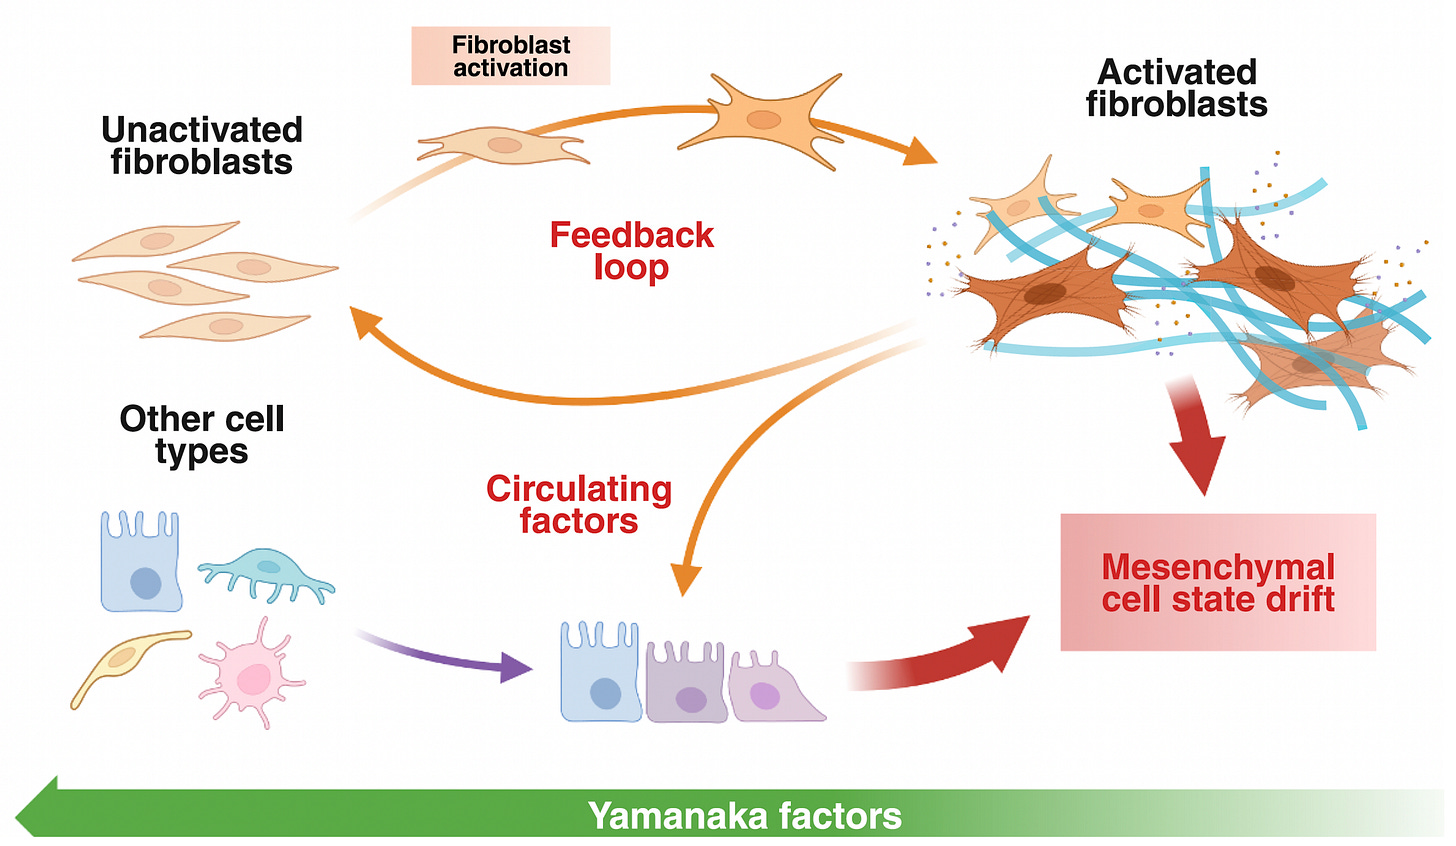
Теперь, когда у нас есть улучшенное понимание процесса с его положительной обратной связью — фибробласты активируют другие фибробласты, которые индуцируют рубцевание, — встаёт вопрос: как можно вмешаться, чтобы заморозить дрейф, избежать эрозии медленного слоя и сохранить ландшафт Уоддингтона, удерживая клетки в их назначенной идентичности? Или, что ещё более амбициозно, фактически обратить вспять произошедшую эрозию?
Ограничение калорий (ОК) со снижением ацетил-КоА и уменьшением метилирования PRC2 способствует сохранению архитектуры медленного слоя, концептуально замораживая дрейф. Ограничение калорий доказано способствует увеличению продолжительности жизни в видах млекопитающих, однако результаты в нечеловекообразных приматах были противоречивы, и масштаб и продолжительность ограничения калорий, вероятно необходимые для людей, являются непрактичными. Тем не менее теоретически частичный эффект от избежания высокого калорийного потребления может помочь предотвратить эрозию.
Использование факторов репрограммирования стволовых клеток Яманаки — наиболее дальновидное вмешательство для омоложения клеток — привлекло наибольшее внимание и огромные инвестиции биотехнологических компаний. Но это сложно, потому что требует кратковременного воздействия четырёх факторов транскрипции OSKM (Oct-4, Sox2, Klf4, c-Myc), называемого "частичным" эпигенетическим репрограммированием, чтобы избежать полного репрограммирования, которое стирает память клеток и превращает их в плюрипотентные стволовые клетки. Это несёт повышенный риск рака. Но при частичном репрограммировании с использованием коротких импульсов наблюдается омоложение, с восстановлением идентичности клеток в старых человеческих фибробластах (даже в возрасте 96 лет) и в животных моделях. Медленный слой восстанавливается, домены PRC2 переустанавливаются, и мезенхимальный дрейф активно разворачивается вспять. Альтернатива кратковременному воздействию для частичного репрограммирования — использование трёх факторов транскрипции OSK (без c-Myc), которые сейчас тестируются в пилотном исследовании пациентов с тяжёлым повреждением зрительного нерва с использованием прямой инъекции в глаз.
Статья в Nature также обсуждает литий как вмешательство для сохранения идентичности нейронов путём воздействия на путь отказа медленного слоя. Литий влияет на GSK3β, что блокирует фосфорилирование тау в экспериментальных моделях. Литий оротат предложен в качестве кандидата для профилактики болезни Альцгеймера, и этот механизм может быть задействован.
Заключительные замечания
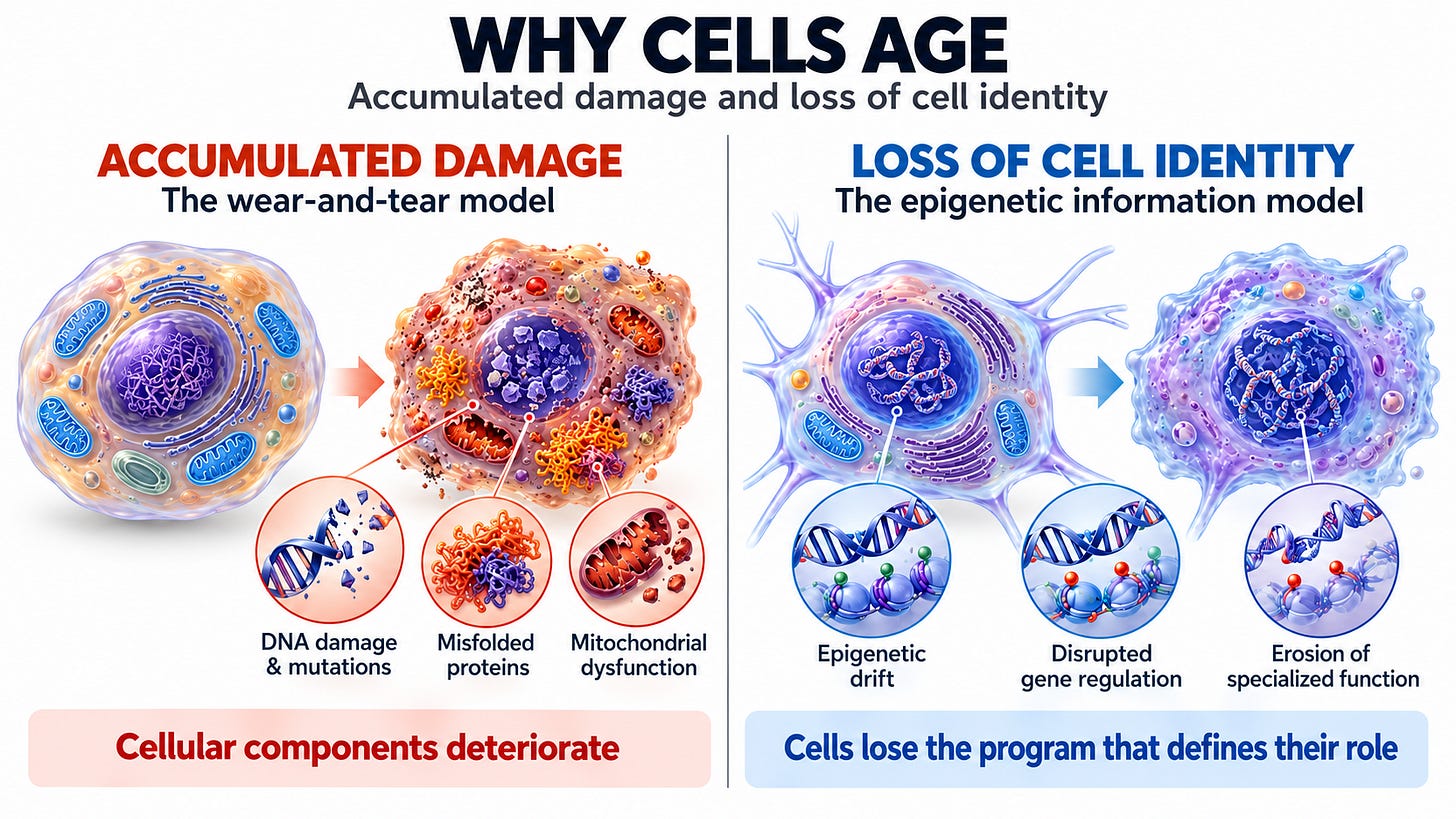
Наука о старении продолжает демонстрировать экстраординарный прогресс. Выходя за пределы старой догмы, что это просто кумулятивный результат мутаций и повреждений клеток, мы теперь понимаем эпигенетическую основу: потеря клеточной идентичности служит как драйвером, так и следствием процесса старения. Основная трёхуровневая грамматика понята, так же как и потенциальные вмешательства для замораживания мезенхимального дрейфа или прямого восстановления ("омоложения") идентичности клетки. Остаётся неопределённым, сможет ли последнее безопасно восстановить ландшафт Уоддингтона и обратить вспять старение на уровне всего тела, органа или ткани у людей.
Но мы знаем, что хроническое стрессирование быстрого слоя может быть вредным для целостности существенного медленного слоя. Следует, что факторы образа жизни, такие как провоспалительная диета, недостаток физических упражнений или плохое качество сна, можно рассматривать как хронические стрессоры, которые могут способствовать эрозии медленного слоя и ускорить потерю идентичности клетки.
История мезенхимального дрейфа — захвата, подобного фибробластам, из-за потери клеточной идентичности — чрезвычайно важна как объяснение происхождения и прогрессирования множества заболеваний. Проскальзывание идентичности может заложить основу для трансформации клетки в раковую — ещё один негативный результат. Несомненно, потеря клеточной идентичности является главной основой возрастных заболеваний.